
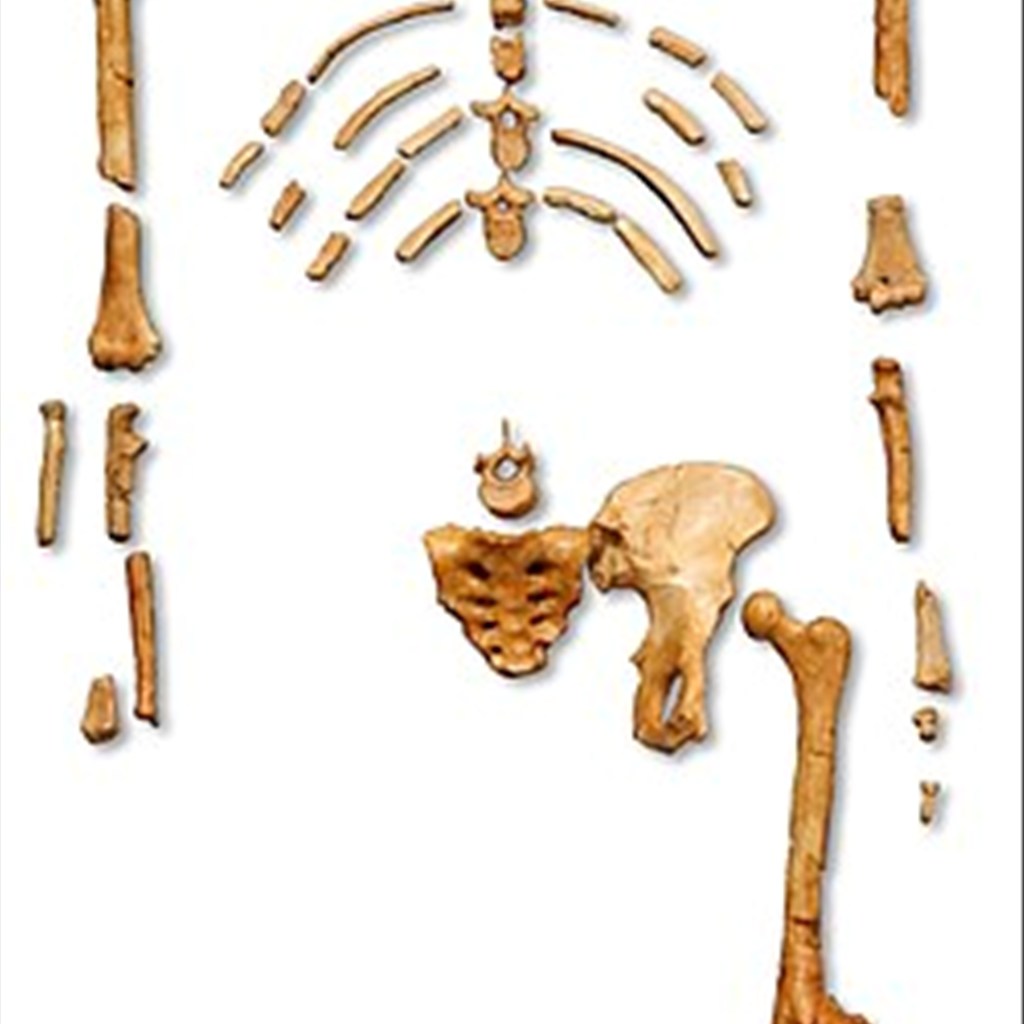
1974年にルーシーが発見された時点で、標本に「Australopithecus afarensis(アウストラロピテクス・アファレンシス)」という種名が付いていたわけではない。発見後、ハダールで増え続けた化石と、タンザニア・ラエトリから知られていた標本を比較し、それらを一つの種としてまとめられるかが検討された。1978年、Donald Johanson、Tim White、Yves Coppensは、これらの資料を新種A. afarensisとして正式に記載した。[S06][S07] ルーシーはその代表的標本になったが、新種の輪郭は一個体だけで描かれたのではない。
1. 種名が付くまでの4年間
ルーシー発見直後のハダール研究では、標本群の形態差をどう解釈するかが定まっていなかった。1976年のJohansonとTaiebの報告は、複数の人類個体を扱い、当時の解釈としてHomoとAustralopithecusの共存可能性まで論じた。[S05] これは後に修正されるが、初期標本の変異がどの分類群に属するかが未解決だったことを示す。
1978年の新種記載では、ハダールとラエトリの資料を同じ形態的まとまりとして捉え、A. afarensisという種名が与えられた。[S06] 種小名afarensisはアファール地方に由来する。名前が付いたことで、それまで個別標本として議論されていた骨や歯を、一つの種の変異として比較する枠組みができた。
ただし「新種と命名された=すべての研究者が即座に同意した」という意味ではない。化石人類の分類は、どの形態差を種差とみなし、どこまでを年齢差・性差・個体差・地域差に含めるかで議論が起きる。A. afarensisも、その後の研究で標本範囲や系統的位置が繰り返し検討されてきた。[S07]
2. ルーシー一体では「種」は作れない
AL 288-1は身体の多くの領域が残る点で非常に重要だが、一個体だけから種全体の変異幅を決めることはできない。ルーシーが小柄だからといって、A. afarensis全個体が同じ大きさだったとは言えない。逆に大型の化石が見つかったから別種とも限らない。
そこで重要になったのが、ハダールのAL 333地点など多数個体の化石である。[S07] 複数個体があれば、大きさの分布、歯の形態差、顎の頑丈さ、四肢の変異を比較できる。異なる個体を重ねることで、種内変異の幅が見えてくる。
Smithsonianは現在、A. afarensisとして300個体を超える化石資料が知られると整理している。[S18] 1970年代の命名後も標本数は増え続け、現在の種概念は当初の数十点だけでなく、より広い資料によって支えられている。
3. AL 333が体格差の議論を変えた
AL 333は多数の個体に由来する化石群として知られ、A. afarensisの集団変異を考えるうえで重要である。[S07] ルーシーが一個体の統合された身体を示すのに対し、AL 333は「同じ種の中にどれほど違いがあるか」を見る資料になる。
A. afarensisでは体格差が大きいとされ、しばしば強い性的二型、つまり雄と雌の体格差として説明される。[S18] しかし化石では性別を独立に確定できる個体が少ないため、「大きい個体は雄、小さい個体は雌」と先に決めると循環論法になり得る。
体格差が大きいこと自体と、その原因を雌雄差とすることは分ける必要がある。個体差、時間差、地域差、成長段階、あるいは複数種の混在という別の可能性も検討しなければならない。現在はA. afarensisを一種として扱う枠組みが広く用いられるが、変異の解釈は研究史上の論点だった。[S07]
4. ルーシーの性別論争が分類にも関係する
ルーシーは小型であることから雌とされ、その愛称とともに女性像が定着した。しかし1990年代には、骨盤形態の分析からAL 288-1を男性とみる議論が提案され、その場合、ハダールの大きさの違いを一種の雌雄差として説明するモデル自体が揺らぐ可能性が指摘された。[S13]
TagueとLovejoyは1998年にこの問題を再検討し、AL 288-1の骨盤は出産可能性と矛盾せず、同標本はA. afarensisの中でも非常に小型の成人であり、女性という従来の解釈を支持した。[S13]
この論争が示すのは、個体の性別判定が種分類と無関係ではないことだ。もし大きな標本群の変異を性差として説明するなら、個体の性推定が分類モデルを支える材料になる。逆に性判定が変われば、変異の説明も再検討が必要になる。化石分類では、こうした複数の推論が互いに連結している。
5. ハダールとラエトリを同じ種にまとめる意味
A. afarensisの1978年記載で重要だったのは、エチオピアのハダールだけでなく、タンザニアのラエトリ資料を同じ種へ統合した点である。[S06][S07] 地理的に離れた場所の標本をまとめるには、年代と形態の両方が整合する必要がある。
ラエトリでは骨化石だけでなく、約3.66 Maの二足歩行足跡も知られる。[S10][S11] 足跡の種帰属は骨化石ほど直接的ではないが、同時期のラエトリにA. afarensis化石があることから、Site Gの足跡は一般にA. afarensisによるものと考えられる。[S10]
この組み合わせによって、A. afarensisは一地域の一個体ではなく、東アフリカの広い範囲と長い時間幅に存在した種として理解されるようになった。Smithsonianは約3.85〜2.95 Maにわたり、エチオピア、ケニア、タンザニアで知られると整理している。[S18]
6. 化石種の境界はどこに引くのか
現生動物なら、繁殖可能性、遺伝的距離、行動、生態など多くの情報で種を考えられる。化石種ではDNAが残らないほど古い場合が多く、形態と年代・地理情報が主要な手がかりになる。そのため「どの程度違えば別種か」という境界は、現生種より見えにくい。
A. afarensisでは、歯、顎、頭骨、体格、四肢など多くの特徴を総合し、一つの変異幅として説明できるかが問題になる。[S07] 一つの特徴だけを取り出して別種を作ると、雌雄差や成長差を種差と誤認する危険がある。一方、すべてを一種へまとめすぎれば、本当に異なる系統を見逃す。
化石分類は「名前を付ければ終わり」ではなく、新標本が出るたびに仮説として検証される。1978年のA. afarensisという枠組みが現在まで重要なのは、その後の多数の標本を比較しても有用性を保ってきたからである。[S07][S18]
7. A. afarensisの身体的な輪郭
Smithsonianの整理では、A. afarensisは小さな脳、突出した顔、比較的長く強い腕、湾曲した指など類人猿的特徴を持つ一方、小さな犬歯と直立二足歩行に適応した身体を持つ。[S18] 脳容量は通常500立方センチメートル未満とされ、現代人の約3分の1程度の規模である。[S18]
重要なのは、これを「半分猿、半分人間」と表現しないことだ。その言い方は現代のチンパンジーから現代人へ一直線に変化する誤った梯子モデルを連想させる。A. afarensisは独自の進化史を持つ種で、当時の環境に適応した身体の組み合わせを持っていた。[S14]
約90万年にわたり存在した可能性があることを考えると、この身体構成は一時的な「不完全段階」ではなく、長く成功した適応だったと見るべきである。[S18]
8. 食性と環境の情報は種像をどう補うか
Smithsonianは、A. afarensisの食性を主に植物性とし、歯の微細摩耗や歯の大きさ・形から、柔らかい果実などを食べる一方、硬い食物を利用できる可能性も紹介している。[S18] ただし食性については、本シリーズの中心問題ではないため、ルーシー個体の食事を確定する材料としては使わない。
ハダールの古環境研究は、河川・氾濫原・草本・樹木を含む変化する景観を示す。[S16][S17] A. afarensisが長期間存続したことと合わせると、一つの狭い環境だけに依存する種ではなかった可能性がある。
ただし「環境が変化したからこの形質が進化した」と直接因果づけるには追加証拠が必要である。環境研究は種が生きた背景を与えるが、個々の形質の進化原因を自動的に説明しない。
9. A. afarensisはHomoの直接祖先なのか
A. afarensisは人類進化上きわめて重要な位置にあるため、「私たちの直接祖先」と紹介されることが多い。Smithsonianは、A. anamensisの直接子孫であり、後のParanthropus、Australopithecus、Homoの祖先である可能性を示しているが、表現は「may be(可能性)」である。[S18]
より広いレビューでも、Australopithecus属がHomoを含む後続分類群の起源に重要だったことは認められる一方、どの種・どの集団が直接祖先だったかは確定していない。[S14][S15]
化石記録が増えるほど、同時期に複数の人類系統が存在した可能性が高まり、一本の祖先列を作るのは難しくなる。したがって「A. afarensisはHomo系統に近い有力な祖先候補」と「ルーシーが私たちの直接祖先」は分けなければならない。
10. 「ルーシー=種の典型」という誤解
博物館や教科書ではルーシーがA. afarensisの代表として使われるため、彼女の身体が種の平均像だと思われやすい。しかしAL 288-1は一個体、それもかなり小型の個体である。[S13]
種を理解するには、大型個体、幼児、別地域の標本、歯や頭骨だけの資料を含めなければならない。ディキカのDIK-1-1は約3歳の幼児の成長状態を示し、AL 333は多数個体の変異を示す。[S07][S09]
ルーシーは「典型値」ではなく、「複数の身体部位が同一個体に保存された基準点」と考える方が適切である。種全体の輪郭は、この基準点を多数の標本で囲むことで見えてくる。
11. 命名から半世紀、何が残ったか
1978年のA. afarensis命名から長い時間が経ち、その間に新しい化石、足跡、CT解析、古環境データが増えた。[S07][S14] それでもA. afarensisという種枠組みは、東アフリカの約385〜295万年前の化石群を理解するうえで中心的に使われている。[S18]
一方、種の生態・歩行・雌雄差・系統的位置については更新が続く。歩行は習慣的二足歩行が強く支持されるが、樹上活動も重要だった可能性が高い。[S14] 性的二型の程度やHomoへの直接祖先関係は、単純な確定事項ではない。
つまり新種名は「答えを固定するラベル」ではなく、比較研究を可能にする仮説的な枠組みである。枠組みが有効だからこそ、その内部で議論を続けられる。
12. 種を決めることが進化の順序を考える前提になる
ルーシーを一個体として理解するだけなら、AL 288-1の骨格を読めばよい。しかし人類進化の順序を考えるには、その個体がどの種の変異に属し、その種がいつからいつまで存在したかを知る必要がある。
A. afarensisという種枠組みが成立したことで、約366万年前のラエトリから約318万年前のルーシー、さらに別時期のハダール標本を長い時間幅の中で比較できるようになった。[S07][S10][S18]
この時間幅の中で、小さな脳と二足歩行が共存している。次の記事では、こうした組み合わせが「脳が先に大きくなり、その後二足歩行になった」という単純な進化順序をなぜ支持しないのかを検討する。
13. 種名は「箱」ではなく検証可能な仮説
化石分類では、標本をある種名の箱へ入れれば作業が終わるわけではない。むしろ種名は、「これらの化石は一つの進化的集団の変異として説明できる」という仮説である。新しい標本が見つかり、その形態が既存の変異幅から大きく外れれば、種の定義を見直す必要がある。[S07]
A. afarensisが現在も有効な分類として広く使われるのは、1978年の命名を権威として守っているからではない。その後に増えたハダール、ディキカ、ラエトリなどの資料を比較しても、種としてのまとまりが研究上有用だからである。[S07][S09][S18]
この考え方に立つと、「新種発見」という言葉の意味も変わる。名前の新しさより重要なのは、どの標本を含め、どの特徴で他の種と区別し、どの程度の変異を一種の中に認めるかという説明責任である。
14. 時間幅が長い種では「変化しないこと」も問いになる
Smithsonianの整理では、A. afarensisは約3.85〜2.95 Maにわたり存在したとされる。[S18] 約90万年という時間は、現代人の種としての歴史より長い。これほど長い時間幅に一つの種名を適用するなら、時代の前半と後半で形態がどの程度変化したかも検討対象になる。
同じ種だから全期間で全く同じ身体だった、と仮定する必要はない。地域や環境の違い、時間に伴う小さな形態変化があっても、一つの種の範囲内に収まる場合がある。一方、変化が大きければ別種・亜種などの議論につながる。
ルーシーは約3.18 Maという種の後半寄りの一点に位置する。[S02][S18] したがってA. afarensisの起源や初期形態をルーシーだけで代表させることはできない。年代の異なる標本群との比較が必要になる。
15. 地域差と種差をどう区別するか
ハダール、ディキカ、ラエトリは地理的に離れている。A. afarensisをこれらの地域へ広く認めるなら、集団間の地域変異も考慮しなければならない。[S06][S18]
現生種でも、地域によって体格や形態に差が生じることがある。化石でその差を見たとき、別種とするか、同じ種の地理的変異とするかは簡単ではない。しかも化石は標本数が限られ、性別や年齢の情報も不完全である。
このため分類では、一つの特徴だけでなく複数の歯・顎・頭骨・四肢特徴を組み合わせ、年代と地理も考慮する。[S07] A. afarensisの種概念が「ハダールのルーシー」だけでなくラエトリ資料も含むのは、こうした総合判断の結果である。[S06]
16. 性的二型をめぐる議論が教えること
A. afarensisの体格差は、人類の社会行動や交配システムまで推定する議論に結びつくことがある。しかし体格の性的二型から社会構造を直接復元するには慎重さが必要である。化石個体の性判定自体に不確実性があるからだ。
SmithsonianはA. afarensisで雄と雌の体格差が大きいと整理する一方、犬歯の大きさでは現生霊長類の典型的な強い雄差と一致しない点を未解決問題として挙げている。[S18] つまり、体格差を見つけたことと、その行動的意味を理解したことは同じではない。
ルーシーの性別論争も、この問題を具体化した。小型個体をすぐ雌と決めるのではなく、骨盤形態と集団内位置を検証する必要があった。[S13] 化石分類と行動推定の両方で、性差は仮定ではなく検証対象である。
17. 「猿的」と「人間的」を足し算しない
A. afarensisの説明では、「猿のような顔」「人間のような脚」といった対比が分かりやすいため多用される。しかし、この言い方だけでは独自の生物としての姿が失われる。
例えば長い腕と湾曲した手指は樹上活動に適応した可能性がある一方、骨盤と下肢は二足歩行に適応している。[S09][S14][S18] これは二つの現生種を半分ずつ混ぜた身体ではなく、A. afarensisという種が持つ一つの統合された身体である。
進化を理解するには、現代人とチンパンジーを両端に置き、化石をその中間に並べるだけでは不十分である。化石種には、どちらの現生種にもそのまま当てはまらない特徴の組み合わせがある。A. afarensisの「輪郭」は、その独自性を認めたときに見えてくる。[S14]
18. 新種A. afarensisが研究にもたらした実用的な力
分類は名前遊びではない。一つの種枠組みを共有することで、異なる研究チームのデータを比較できる。ラエトリの歯、ハダールの骨盤、ディキカの幼児骨格をA. afarensisという共通仮説のもとで並べ、成長・運動・食性・変異を検討できる。[S06][S07][S09]
もし標本ごとに別々の名前を付ければ、変異を比較する枠組みが失われる。逆に何でも同じ種へ入れれば、進化的多様性を消してしまう。分類は、この二つの誤りの間で最も説明力の高い区切りを探す作業である。
1978年の命名の意義は、ルーシーを有名にしたことではなく、300万年以上前の東アフリカに広がる化石群を比較する共通言語を作ったことにある。[S06][S07]
19. 「新しい種の輪郭」は今も更新中
現在、A. afarensisについて多くの基本像は安定している。長い時間幅、東アフリカでの分布、小さな脳、習慣的二足歩行、樹上活動に関係する特徴などである。[S14][S18]
一方、どの程度の性的二型があったか、成長が現代人とどのように違ったか、食性の柔軟性、Homoへの系統的位置などには研究余地がある。[S09][S14][S18]
種名は50年前の結論を凍結するものではなく、こうした問いを共通標本群で検討するための枠組みとして機能している。ルーシーはその中の一個体であり、同時に最も詳細な身体統合情報を持つ標本の一つである。
20. 「タイプ標本」だけで種の全体像は決まらない
化石種の名前が付くと、読者は一つの標本がその種の完全な見本だと考えがちである。しかしA. afarensisという分類は、ルーシー一体だけで成立するものではなく、ハダールやラエトリから得られた複数標本の共有特徴と変異を比較して構築された。[S06][S07] その後さらに多数の標本が加わり、Smithsonianはこの種について300個体を超える資料が知られると整理している。[S18]
種を考えるとき重要なのは、「典型」と「変異」を同時に扱うことである。ある特徴がルーシーに見られても、それが性差なのか、年齢差なのか、個体差なのか、種を特徴づける形質なのかは他個体との比較なしには決めにくい。逆に、集団内に幅広い変異があるからといって、すべてを別種に分ければよいわけでもない。どこまでを一種内変異として説明できるかが分類の中心問題になる。
このためA. afarensisの「輪郭」は、名称が付いた1978年で完成したのではない。新標本が増えるたびに、診断特徴、性的二型、地域差、時間変化の説明力が試され続けている。[S07][S14]
21. 分類は進化系統そのものではない
種名を付けることと、その種が誰の直接祖先かを決めることも別である。A. afarensisが後の複数の人類系統に近い重要な位置を占めることは広く認められているが、そこから「A. afarensisはHomoの確定した直接祖先」と一段飛ばしに結論することはできない。[S14][S15]
系統関係を評価するには、時間的に先行することだけでなく、形態形質の組み合わせ、派生形質、地理的連続性、同時代の別系統の存在を検討する必要がある。化石記録が不完全である以上、祖先と近縁な側枝を完全に区別できない場合もある。
したがって分類学の役割は、一本の家系図を確定することより、比較できる単位を作ることにある。A. afarensisという仮説的単位が安定しているからこそ、他の初期人類との形態差、年代差、歩行様式を共通の枠で議論できる。種名は結論であると同時に、次の比較を可能にする研究道具でもある。
分類の安定性を評価する際には、種名が長く使われていることと、すべての研究者が細部まで同意していることを区別する必要もある。A. afarensisという名称は広く定着し、ルーシー、AL 333、ラエトリ資料などを比較する共通単位として機能している。[S07][S18] しかし、種内の性的二型の程度、地域差、時間変化、他の初期人類との境界には研究上の論点が残る。[S13][S14] 「種名が確立している」ことは「その種について未解決問題がない」ことを意味しない。
逆に、論争が残るからといって分類が任意というわけでもない。歯、顎、頭蓋、体幹・四肢など複数形質の組み合わせと、年代・地域の分布を比較し、最も説明力のあるまとまりを検討するのが化石分類である。[S06][S07] 新しい種の提案はラベル付けではなく、既存標本群を一つの変異範囲として説明できるかという検証可能な主張である。A. afarensisの輪郭が半世紀後も研究対象であるのは、その仮説が多くの新資料を受け止めながら、同時に境界条件を問い直され続けているからである。
参考文献・参照先
- [S02] Institute of Human Origins, Arizona State University (2024), “About the Fossil Lucy”, IHO.
- [S05] Johanson & Taieb (1976), “Plio–Pleistocene hominid discoveries in Hadar, Ethiopia”, Nature 260, 293–297, 10.1038/260293a0.
- [S06] Johanson, White & Coppens (1978), “A new species of the genus Australopithecus (Primates: Hominidae) from the Pliocene of eastern Africa”, Kirtlandia 28, 1–14, BioStor 193077.
- [S07] Kimbel & Delezene (2009), “‘Lucy’ redux: A review of research on Australopithecus afarensis”, American Journal of Physical Anthropology 140(S49), 2–48, 10.1002/ajpa.21183.
- [S09] Alemseged et al. (2006), “A juvenile early hominin skeleton from Dikika, Ethiopia”, Nature 443, 296–301, 10.1038/nature05047.
- [S10] Smithsonian Human Origins Program (2026), “Laetoli Footprint Trails”, Smithsonian Institution.
- [S11] McNutt et al. (2021), “Footprint evidence of early hominin locomotor diversity at Laetoli, Tanzania”, Nature 600, 468–471, 10.1038/s41586-021-04187-7.
- [S13] Tague & Lovejoy (1998), “AL 288-1—Lucy or Lucifer: gender confusion in the Pliocene”, Journal of Human Evolution 35, 75–94, 10.1006/jhev.1998.0223.
- [S14] Ward et al. (2023), “Reappraising the palaeobiology of Australopithecus”, Nature, 10.1038/s41586-023-05957-1.
- [S15] de Ruiter et al. (2017), “Late Australopiths and the Emergence of Homo”, Annual Review of Anthropology 46, 99–115, 10.1146/annurev-anthro-102116-041734.
- [S16] Levin et al. (2008), “Hominid environments at Hadar from paleosol studies in a framework of Ethiopian climate change”, Journal of Human Evolution.
- [S17] Reed (2008), “Paleoecological patterns at the Hadar hominin site, Afar Regional State, Ethiopia”, Journal of Human Evolution.
- [S18] Smithsonian Human Origins Program (2026), “Australopithecus afarensis”, Smithsonian Institution.
FACT CHECK
Confirmed Facts
- A. afarensisは1978年にJohanson、White、Coppensによって新種として記載された。[S06]
- ハダールとラエトリの標本が種の定義に統合された。[S06][S07]
- SmithsonianはA. afarensisを約3.85〜2.95 Maの東アフリカに存在した種として整理している。[S18]
Supported Interpretation
- A. afarensisには大きな体格差があり、性的二型が重要な説明候補である。[S18]
- AL 288-1は女性とみる解釈が現在も主要だが、研究史上議論があった。[S13]
Qualified / Disputed Claims
- 性的二型の正確な程度、A. afarensisの直接祖先・子孫関係、Homoへの直接祖先関係は単純な確定事項ではない。[S14][S15]
Rejected / Misleading Claims
- 「ルーシー一体だけでA. afarensisという種が決まった」は不正確。
- 「A. afarensis=確定した現生人類の直接祖先」は過剰な断定。
Unsupported Critical Claims = 0