
THE QUESTION
100年後、1918年のウイルスはどう解かれたのか――保存組織・ゲノム・再構築について、この回が担う固有の論点は何か。
STORY SO FAR
前回「パンデミックはいつ終わったのか――1919〜1921年、後続する波の実像」で確認した論点を受け、この回では100年後、1918年のウイルスはどう解かれたのか――保存組織・ゲノム・再構築について、この回が担う固有の論点は何か。を扱う。
1918年のパンデミックが起きた当時、研究者は原因となったウイルスを見ることができなかった。
「インフルエンザ」という病名は存在していた。患者は発熱し、咳をし、肺炎を起こした。しかし、インフルエンザウイルスそのものがヒトから分離されるのは1930年代である。1918年の医師たちは、後世の私たちが知る「H1N1インフルエンザAウイルス」という正体を知らないまま、世界的流行と向き合っていた。
それから数十年後、1918年に死亡した人々の保存組織が、当時は想像もできなかった方法で読み直される。
病理標本の中に残った微量のウイルスRNA。永久凍土に埋葬された犠牲者の組織。複数の研究者が何年もかけて集めた遺伝子断片。
それらをつなぎ合わせることで、失われた1918年ウイルスのゲノムが段階的に復元された。
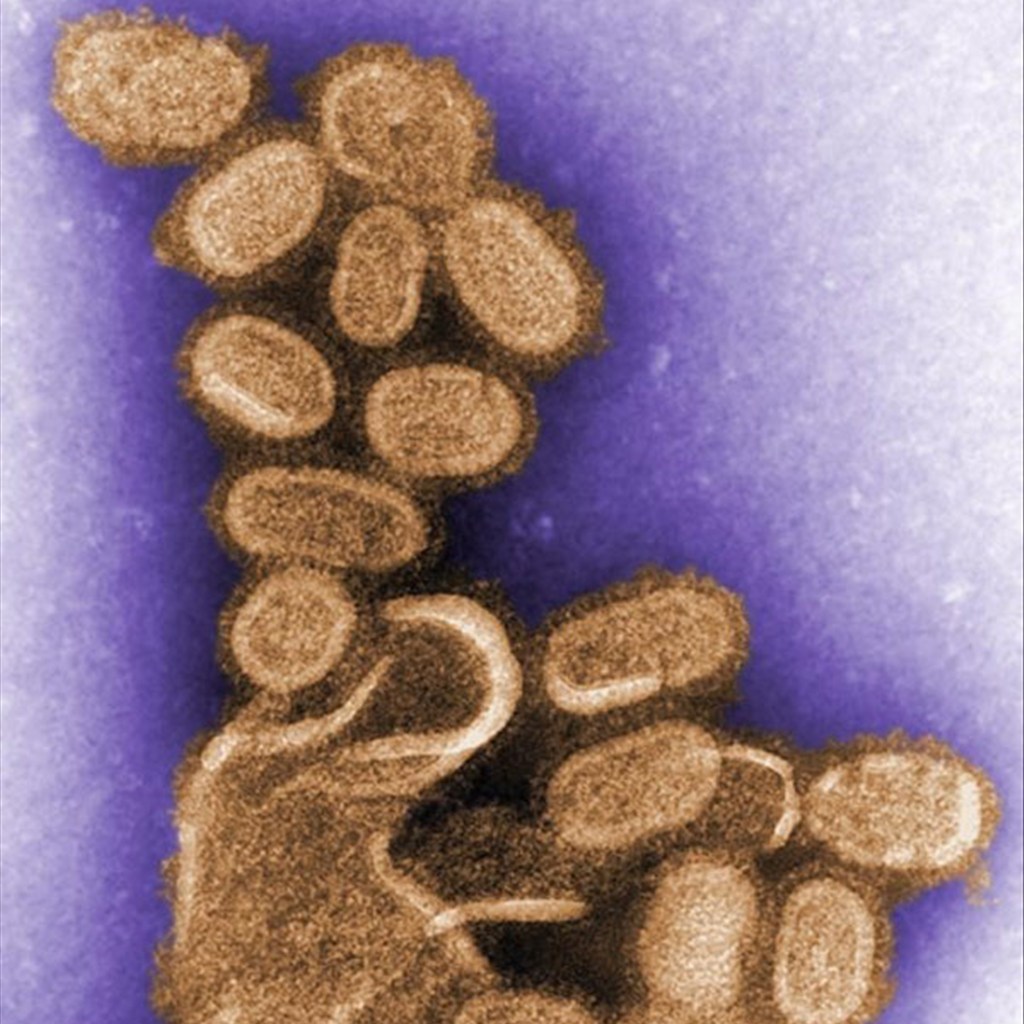
そして2005年、CDCを含む研究チームは、その配列情報をもとに1918年ウイルスを高封じ込め環境で再構築し、なぜこのウイルスが異常な病原性を示したのかを研究した。
この研究史は、ときに「永久凍土の墓から殺人ウイルスを蘇らせた」という刺激的な物語として紹介される。
しかし実際には、もっと長く、慎重で、分業された科学の積み重ねだった。
重要なのは、危険な病原体を「復活させた」という一点ではない。
1918年には正体すらわからなかった病原体を、保存された証拠からどこまで再構成できたのか。そして、その研究から何がわかり、何が今もわかっていないのか。
これがCASE065の最後の問いである。
1918年にはウイルスそのものを保存できなかった
1918年当時、インフルエンザウイルスを分離・培養し、冷凍保存して後世へ残す技術は存在しなかった。
そのため「1918年ウイルスの標本」がそのまま研究所の冷凍庫に残っていたわけではない。
残ったのは、亡くなった患者の病理組織だった。
20世紀初頭の病理学では、死亡した患者から採取した組織を固定し、薄い切片として保存することが行われていた。こうした標本は本来、顕微鏡で病変を観察するためのものである。
数十年後、その固定組織の中に病原体由来の核酸断片が残っていれば、分子生物学の技術で読み取れる可能性が生まれた。
ここで1918年研究に重要な役割を果たしたのが、米国のArmed Forces Institute of Pathology、AFIPに保存されていた軍人の病理標本である。
Jeffery Taubenbergerらの研究チームは1990年代、1918年に死亡した患者の保存肺組織から、インフルエンザウイルス由来と考えられるRNA断片を探した。
これは簡単な「古い標本を検査した」という話ではない。
RNAはDNAより分解しやすい。しかも数十年前の固定組織では、遺伝情報は長い完全な鎖ではなく、細かな断片として残っている。
したがって研究者が読んだのは、完全なウイルスゲノムが一本そのまま保存されていたものではない。
小さな断片を確認し、重なる部分を比較し、時間をかけて配列をつないでいく作業だった。
この点を理解すると、「1918年ウイルスが保存されていた」という表現の意味が変わる。
保存されていたのは、生きたウイルスではなく、ウイルスが残した分子的な痕跡だった。
1951年、Johan Hultinがアラスカへ向かった
1918年ウイルスを探す物語には、もう一つの系譜がある。
1951年、若い研究者Johan HultinはアラスカのBrevig Missionへ向かった。
この集落は1918年パンデミックで極めて大きな被害を受け、多数の住民が短期間に死亡していた。犠牲者の一部は永久凍土の墓地に埋葬されていた。
Hultinは、凍結状態の組織に1918年インフルエンザウイルスが残っている可能性を考えた。
彼は現地で許可を得て組織を採取し、生きたウイルスを回収できないか試みたが、成功しなかった。
1951年の時点では、1918年ウイルスの全遺伝情報を読むという現在の発想そのものが現実的ではなかった。
そのため、この最初の試みは長く「成果が得られなかった探索」として残る。
ところが約半世紀後、状況が変わる。
Hultinは、Taubenbergerらが保存病理標本から1918年ウイルスの遺伝子断片を読み始めたことを知った。
必要なのは生きたウイルスではない。
十分に保存された組織から、遺伝子断片が得られればよい。
この技術的変化によって、1951年には意味を持たなかった資料が、1990年代には極めて価値の高い資料へ変わった。
1997年、Brevig Missionへ戻る
1997年、Hultinは再びBrevig Missionを訪れた。
この再訪について重要なのは、単なる「研究者が墓を掘った」という話ではない。
CDCの解説では、Hultinは現地コミュニティから適切な許可を得たうえで調査を行ったとされる。1918年の犠牲者は研究材料である以前に、その土地で暮らした人々であり、その遺体を扱う行為には倫理的配慮が必要だからである。
永久凍土に埋葬されていた犠牲者の一人から、保存状態のよい肺組織が得られた。
この資料がTaubenbergerらの研究へ渡り、AFIPの保存標本とともにゲノム解析を進める重要な材料になった。
ここでも、Brevig Missionを過度に神話化する必要はない。
1918年ウイルスのゲノムは、Brevig Missionの一体の遺体だけから突然「発見」されたわけではない。
複数の保存標本、複数の患者、異なる場所の資料を照合しながら、長い時間をかけて配列が復元された。
複数試料が重要なのは、ある配列が一人の患者だけに存在した変異なのか、それとも1918年パンデミックウイルスに共通する特徴なのかを考えるためでもある。
科学的には「一つの奇跡的標本」より、独立した証拠が一致することの方が重要だった。
Google Mapsで現在のBrevig Mission周辺を確認
現在のBrevig Mission集落のおおまかな位置。1918年犠牲者の墓地・発掘地点・個別埋葬地点を示すものではない。
地図注記
この地図は、現在のアラスカ州Brevig Mission集落のおおまかな地理的位置を示すためのものである。1918年犠牲者の墓地の正確な位置、発掘地点、個別埋葬地点を示すものではない。
1997年から2005年――ゲノムは少しずつ埋まっていった
1918年ウイルスの解読は、一度の研究で全ゲノムが完成したのではない。
1990年代後半から2000年代前半にかけて、Taubenbergerらは保存組織から得られたRNA断片を使い、1918年ウイルスの遺伝子配列を段階的に報告していった。[5]
最初に得られた配列は、ウイルス全体から見ればごく一部だった。
その後、表面タンパク質をコードする遺伝子を含め、各遺伝子分節の解析が進む。
2005年までに、1918年ウイルスの全8遺伝子分節について完全なコード配列が得られ、全ゲノムを比較できる状態になった。
この「8分節」という特徴はインフルエンザAウイルスを理解するうえで重要である。
インフルエンザAウイルスのゲノムは一本の連続したRNAではなく、8本のRNA分節から構成される。したがって進化の過程では、異なるインフルエンザウイルスが同じ宿主で共存したとき、分節の組み合わせが変わる再集合という現象も起こり得る。
1918年ウイルスの全配列が得られたことで、後の1957年、1968年、2009年などのインフルエンザウイルスとの進化的関係を、より具体的に比較できるようになった。[1]
1918年は単に「過去に消えた特殊なウイルス」ではなく、その後のヒトインフルエンザの歴史へ長い影響を残した祖先的存在として見えるようになった。
「1918年ウイルスは鳥から直接来た」はどこまで言えるのか
ゲノム解読によって、1918年ウイルスと鳥類インフルエンザウイルスの関係も詳しく調べられた。
しかし、ここでも単純化には注意が必要である。
1918年ウイルスの遺伝子は鳥類ウイルスとの近縁性を示す一方、それが「1918年に鳥から人へ一度だけ直接飛び移った」という一行の物語をそのまま証明するわけではない。
ウイルスがどの宿主を経由したのか、いつヒトへの適応が進んだのか、どの程度の期間ヒト集団内で進化していたのかについては、現在も研究上の論点が残る。
CASE065-02で見た「起源が確定できない」という問題は、ゲノム解読後にも完全には消えなかった。
配列がわかれば、進化的関係は以前よりはるかに詳細に推定できる。
しかし、保存試料が少なく、パンデミック直前の世界各地から連続した配列が残っていない以上、「この町で、この日に、この宿主から人へ移った」と地理的・時間的な一点へ縮めることはできない。
科学は空白を大きく埋めたが、100年前の出来事を完全な監視映像のように再現したわけではない。
なぜ「配列」だけでは足りなかったのか
ゲノム配列が完成すると、研究者は1918年ウイルスの各遺伝子がどのような特徴を持っていたかを比較できる。
しかし、配列を読んだだけで「このウイルスはなぜこれほど危険だったのか」という問いに完全には答えられない。
遺伝子配列は設計情報であって、実際の病原性は複数の機能が組み合わさって現れるからである。
ある遺伝子が細胞内での増殖に影響することもあれば、別の遺伝子が宿主範囲や免疫応答に関係することもある。
さらに、1918年パンデミックの死亡は、ウイルスそのものの病原性だけで決まったわけではない。
CASE065-04で見たように、多くの死亡例では二次性細菌性肺炎が重要だった。年齢、過去のインフルエンザ曝露、栄養状態、医療資源、戦争環境も結果を左右した。
したがって「1918年には一個の殺人遺伝子があり、それが世界的被害を生んだ」という物語は成立しない。
研究者が知りたかったのは、複数の遺伝子がどのように病原性へ寄与し、それが宿主側の条件とどう組み合わさるかだった。
2005年、失われたウイルスを再構築する
2005年、CDC、Mount Sinai School of Medicine、AFIPなどの研究者は、解読された1918年ウイルスの遺伝情報を利用し、完全な1918年ウイルスを研究目的で再構築した。[1]
これは通常の研究ではない。
CDCの公式記録によれば、実験開始前にInstitutional Biosafety Committeeなどによる審査が行われ、CDC幹部を含む監督の下で、BSL-3 enhancedと呼ばれる高い封じ込め条件が用いられた。
担当者も限定され、研究対象の危険性を前提とした追加のバイオセーフティ、バイオセキュリティ措置が取られた。
ここで重要なのは、再構築の「やり方」を再現することではない。
この研究の意味は、配列情報だけではわからなかった1918年ウイルスの性質を、厳格な管理下で実験的に比較できるようにしたことにある。
本記事でも、具体的な再構築手順、材料、操作条件など、再現に使える技術情報は扱わない。
扱うのは、なぜ再構築が行われ、どのような安全上・倫理上の枠組みが必要とされ、そこから何がわかったのかである。
再構築研究で何がわかったのか
再構築された1918年ウイルスを使った研究では、動物モデルなどで非常に高い病原性が観察された。
CDCの解説では、1918年ウイルスは比較対象となる季節性インフルエンザウイルスより肺で速く増殖し、重い肺障害を引き起こしたと説明されている。
また、病原性は単一の遺伝子だけで説明できず、複数のウイルス遺伝子が寄与することが示された。
これは重要な結果だった。
もし「この変異一つが1918年を作った」とわかれば、将来の監視はその変異だけを探せばよいように思える。
しかし現実のインフルエンザウイルスはそれほど単純ではない。
複数の遺伝子の組み合わせ、宿主への適応、免疫応答、感染部位、二次感染などが病原性を形づくる。
CDC自身も、1918 H1N1の性質がなぜこれほど破壊的だったのかは完全には理解されていないとしている。
ゲノムを読み、ウイルスを再構築しても、パンデミックの全原因が一つの答えに収束したわけではない。
むしろ「どこまでがウイルス固有の性質で、どこからが社会・宿主・医療環境との相互作用なのか」という、より精密な問いへ進んだ。
二次性細菌性肺炎の意味も消えなかった
再構築研究によって1918年ウイルス自体の病原性が高かったことがわかっても、「死亡の多くは二次性細菌性肺炎と関係した」という病理学的知見は否定されない。
この二つは矛盾しない。
強いウイルス感染が呼吸器の防御機構を損ない、その後の細菌感染を起こりやすくすることがある。
1918年には抗菌薬がない。
したがって、ウイルスの高い病原性と細菌性肺炎が連鎖することで、死亡リスクがさらに大きくなったと考えられる。
これは「原因を一つにする」考え方の限界を示す。
1918年の被害を説明するには、少なくとも、
- ウイルスの性質
- 宿主の免疫状態
- 二次性細菌感染
- 年齢構造
- 医療技術
- 戦時の人口移動
- 医療資源不足
- 公衆衛生対応
を同時に見る必要がある。
CASE065のPrimaryStoryTypeをSYSTEMとした理由が、最後の記事でも戻ってくる。
再構築は「成功したから安全」だったのか
危険な歴史的病原体を再構築する研究には、当然ながらリスクがある。
2005年の研究も、公開当時からバイオセーフティとバイオセキュリティの観点で注目された。
CDCは、研究開始前の複数段階の審査、高封じ込め環境、担当者の制限、健康監視などの安全措置を公式に説明している。
研究の目的は、1918年ウイルスの病原性を理解し、将来のパンデミック準備、治療薬、ワクチン、監視に役立つ知識を得ることだった。
一方、「科学的価値がある」ことは「リスクがゼロ」という意味ではない。
この種の研究では、得られる知識、代替手段の有無、事故・不正利用のリスク、封じ込め能力、公開情報の扱いなどを継続的に評価する必要がある。
1918年ウイルスの再構築は、単なる技術的偉業ではなく、高リスク研究を社会がどのような条件で許容するかという問題も含んでいた。
その点まで含めて初めて、この研究史を理解したことになる。
Brevig Missionは「ウイルスの発生地」ではない
Brevig Missionが1918年研究史で重要だからといって、ここがパンデミックの起源だったわけではない。
この区別は特に重要である。
Brevig Missionは、1918年秋に極めて大きな被害を受けた場所であり、永久凍土によって犠牲者の組織が長期間保存されたことで、後世の研究に重要な資料を提供した。
つまり役割は起源地点ではなく、保存地点・研究史上の資料地点である。
そのため本記事のGoogle Mapも、現在のBrevig Missionがアラスカのどこにあるかを読者が把握するためにだけ用いる。
墓地の正確な位置や個別の埋葬地点を示す必要はないし、示すべきでもない。
地図の目的は研究史の地理的スケールを理解することであって、センシティブな地点を特定することではない。
1918年ウイルスは本当に「絶滅」していたのか
「失われたウイルスを蘇らせた」という表現には、もう一つ注意点がある。
1918年パンデミック当時の完全なウイルスそのものは、流行後に研究用株として保存されていなかった。
しかし、その遺伝的系譜が完全に消えたわけではない。
1918年H1N1の子孫は、その後の季節性インフルエンザとしてヒト集団内で循環した。
さらに後年のインフルエンザAウイルスは、1918年系統に由来する遺伝子を受け継ぎながら進化していった。
その意味で、1918年ウイルスは「歴史の中から完全に消滅した孤立した病原体」ではない。
2005年に再構築されたのは、保存試料から復元された1918年当時の配列に基づくウイルスである。
一方、その進化的な子孫は、形を変えながら20世紀以降のインフルエンザ史に残り続けた。
この違いを理解すると、「復活」という言葉だけでは表せない連続性が見える。
100年後にも残った未解決問題
1918年研究は驚くほど進んだ。
原因ウイルスの型がわかった。
全ゲノムが読まれた。
複数の保存組織が比較された。
病理標本が再評価された。
再構築ウイルスを使った研究も行われた。
それでも未解決問題は残る。
正確な地理的起源はわからない。
パンデミックウイルスがどの進化経路で成立したのかには論点がある。
春の第一波と秋の第二波の死亡差を一つの遺伝子変化だけで説明することもできない。
若年成人の異常な死亡についても、免疫履歴、ウイルス病原性、細菌性肺炎など複数要因が関係する。
世界死亡者数すら、資料制約のため一つの確定値にはならない。
つまり、ゲノム解読は「すべての謎を解いた最後の答え」ではなかった。
逆に、どこまで証拠があり、どこから先が推論なのかを以前より厳密に分けられるようにした。
1918年から得られた本当の遺産
1918年パンデミックから100年以上が経過した現在、当時とは比較にならないほど多くの道具がある。
ウイルスのゲノムを短時間で読むことができる。
世界各地でサーベイランスが行われる。
ワクチンを開発できる。
抗ウイルス薬がある。
二次性細菌感染には抗菌薬がある。
集中治療や酸素療法もある。
国際機関が情報を共有し、感染症の流行を追跡する仕組みも存在する。
それでも、パンデミックの難しさがなくなったわけではない。
未知の病原体の初期情報は不完全である。
感染者は行政境界を越えて移動する。
医療資源には上限がある。
対策には社会的コストがある。
統計は観測方法によって変わる。
科学的理解は流行と同時には完成しない。
1918年の研究史が示す最大の教訓は、「過去の答えを一つ覚えれば次のパンデミックに勝てる」ということではない。
重要なのは、証拠を残し、比較し、不確実性を明示しながら、知識を更新できるシステムを持つことである。
1918年の医師たちは原因ウイルスを知らなかった。
それでも病理標本を残した。
半世紀後、Hultinは永久凍土の資料を探した。
さらに数十年後、Taubenbergerらが遺伝子断片を読み、複数の標本からゲノムを組み上げた。
そしてCDCの研究者らが、高度な安全管理の下でウイルスの性質を検証した。
一つの世代では解けなかった問いが、別の世代の技術によって読み直された。
それが1918年パンデミック研究の最も重要な物語である。
CASE065の結論
CASE065では、1918年パンデミックを八つの角度から追ってきた。
最初に、世界人口の大きな割合を巻き込み、通常とは異なる若年成人死亡を示した世界的流行の全体像を確認した。
次に、起源が現在も確定できない理由を見た。
第一次世界大戦の兵員・鉄道・港・船舶ネットワークが、感染の地理的拡大を加速した構造を追った。
W字型死亡曲線と二次性細菌性肺炎から、死亡負荷が単一要因では説明できないことを確認した。
都市ごとのNPIでは、対策の早さと重ね方がピークを変え得る一方、観察研究から単純な万能策を導けないことを見た。
日本では、内務省の行政記録と後世の超過死亡推計を分離し、同じパンデミックでも「何を数えるか」で数字が変わることを確認した。
1919年、1920年まで続く波から、「終息」が病原体消滅ではなく、異常なパンデミック状態から季節性流行へ移る過程であることを見た。
そして最後に、1918年当時には正体不明だった病原体が、保存組織と分子生物学によって数十年後に読み直された。
このシリーズを貫く答えは、ウイルス一個の強さではない。
ウイルス、人口移動、戦争、密集、免疫、細菌感染、医療、行政、報道、統計、そして科学技術が相互作用した結果として、1918年の被害は生まれた。
だから1918年パンデミックは、感染症のCASEであると同時に、社会システムのCASEでもある。
100年後に残る価値も、そこにある。
事実確認
1918年当時、原因がH1N1ウイルスだとわかっていたのか
わかっていなかった。 ヒトインフルエンザウイルスが分離されるのは1930年代で、1918年ウイルスがH1N1インフルエンザAウイルスであることは後世の研究で確立した。
1918年の生きたウイルスがそのまま永久凍土から回収されたのか
違う。 後世のゲノム解析に利用されたのは、保存病理組織や凍結保存状態にあった肺組織などに残るウイルスRNAの断片である。1951年のHultinによる生きたウイルス回収の試みは成功しなかった。
HultinはBrevig Missionへ一度だけ行ったのか
違う。 1951年に最初の調査を行い、1997年に再訪した。CDCの説明では、現地コミュニティの許可を得たうえで保存組織を回収した。
Brevig Missionは1918年パンデミックの発生地なのか
違う。 研究上重要な保存組織が得られた場所であり、地理的起源を示す場所ではない。
2005年に1918年ウイルスは再構築されたのか
再構築された。 CDCを含む研究チームが解読された遺伝情報を用い、高封じ込め環境と機関審査の下で研究目的の再構築を行った。本記事では再現可能な実験手順は扱わない。
再構築研究で「一つの殺人遺伝子」が見つかったのか
そのように単純化できない。 複数の遺伝子が病原性に関係し、1918年の死亡負荷には宿主側要因や二次性細菌性肺炎なども関与した。CDCも1918年ウイルスの破壊的性質が完全に理解されたとはしていない。
1918年ウイルスの系統はパンデミック後に完全消滅したのか
完全に切れたわけではない。 その子孫系統は季節性インフルエンザとして循環し、その後のインフルエンザウイルスの進化にも遺伝的な影響を残した。
FACT CHECK|出典・参考資料
- [1] Centers for Disease Control and Prevention, “The Deadliest Flu: The Complete Story of the Discovery and Reconstruction of the 1918 Pandemic Virus”
- [2] Centers for Disease Control and Prevention, “Ask a CDC Scientist: Dr. Terrence Tumpey and the Reconstruction of the 1918 Pandemic Virus”
- [3] Centers for Disease Control and Prevention, “Reconstruction of the 1918 Influenza Pandemic Virus”
- [4] Centers for Disease Control and Prevention, “1918 Pandemic (H1N1 virus)”
- [5] Taubenberger JK, Morens DM. “The 1918 influenza pandemic: 100 years of questions answered and unanswered.”
- [6] Morens DM, Taubenberger JK, Fauci AS. “Predominant role of bacterial pneumonia as a cause of death in pandemic influenza.”
スペインかぜ|なぜ感染は世界規模へ広がり、社会はどう対応したのか 第8回 全8回 全8回を見る
- 01 スペインかぜとは何だったのか――1918年、世界を覆ったパンデミック
- 02 スペインかぜ|パンデミックはどこから始まったのか――起源が今も断定できない理由
- 03 スペインかぜ|なぜ世界中へ広がったのか――第一次世界大戦と人の移動
- 04 スペインかぜ|なぜ若い成人まで多く死んだのか――第二波と異常な死亡曲線
- 05 スペインかぜ|都市は何をしたのか――休校・集会禁止・隔離と対応の差
- 06 スペインかぜ|日本では何が起きたのか――大正7年から始まった三つの流行
- 07 スペインかぜ|パンデミックはいつ終わったのか――1919〜1921年、後続する波の実像
- 08 スペインかぜ|100年後、1918年のウイルスはどう解かれたのか――保存組織・ゲノム・再構築