
THE QUESTION
なぜ胎児に重い障害を起こしたのか――感受性時期と現在の作用機序理解はどのような仕組みで成立・進行したのか。
STORY SO FAR
前回「先天異常との関係はどう突き止められたのか――1961年、レンツとマクブライドの警告」で確認した論点を受け、この回ではなぜ胎児に重い障害を起こしたのか――感受性時期と現在の作用機序理解はどのような仕組みで成立・進行したのか。を扱う。
サリドマイドの胎児への影響には、二つの別々の問いがある。
一つは、妊娠のいつ服用すると危険なのか。
もう一つは、薬が胚の中で何を変え、なぜ四肢、耳、眼、心臓など特定の器官形成を損なうのかである。
この二つは同じ問題ではない。
サリドマイド薬害では、どの時期の曝露がどの形成異常と結び付くかという「感受性時期」は、1960年代の臨床記録からかなり早く整理された。[1]一方、分子レベルの作用機序はその後何十年も未解決のまま残り、2010年のCRBN(セレブロン)同定、2018年以降のSALL4などの研究によってようやく大きく前進した。[2]
現在でも、「一つの分子だけでサリドマイド胎芽症のすべてを完全に説明できる」とは言えない。
分かっている部分と、まだ統合し切れていない部分を分けて見る必要がある。
危険なのは「妊娠中ならいつでも同じ」ではない
サリドマイドによる典型的な構造異常には、非常に狭い感受性時期がある。
人で蓄積された服薬時期と出生後の所見を照合した研究では、主な催奇形性の感受性期間は、受精後およそ20〜36日と整理されている。
最終月経開始日から数える臨床的な妊娠週数では、およそ34〜50日付近に相当する。
この違いは重要である。
医学論文で「受精後20日」と書かれているものを、そのまま「妊娠20日」と読み替えると約2週間のずれが生じる。胚発生を扱う記事では、受精後日数と最終月経からの妊娠日数を混同してはいけない。
そして、20〜36日の中でも影響は均一ではない。
胚ではこの短期間に、耳、眼、四肢、心臓、内臓などが異なる順序で急速に形作られている。したがって、サリドマイドへ曝露した日が数日違うだけでも、障害を受けやすい器官が変わりうる。
「何錠飲んだか」だけでは説明できない理由
一般的な毒性では、「量が多いほど影響が強い」という関係を考えやすい。
だが、胎児発生では量だけでなく時間が極めて重要になる。
サリドマイドについては、過去の臨床記録から、感受性時期のどこで曝露したかによって障害部位が変わるという特徴的な時系列が作られた。
後年のレビューでは、おおむね次のように整理されている。
- 受精後20〜24日ごろ:外耳や脳神経系に関係する異常が現れやすい
- 24日以降:耳、眼、上肢などの異常が加わる
- 24〜30日前後:上肢の形成異常が目立つ
- 27日以降:下肢の異常も現れやすくなる
- 20〜36日全体:四肢だけでなく、眼、耳、顔面、心臓、腎臓、消化管、生殖器など多臓器が影響を受けうる
ただし、この表を「1日単位の絶対的な境界」と理解するのは危険である。
これらは主として、実際にサリドマイドを服用した妊婦の記録と、出生した子どもの所見を後から照合して作られた臨床的タイムテーブルである。服薬日の記憶、妊娠成立日の推定、服薬回数などには誤差がありうる。
したがって、20日なら必ずこの異常、21日なら別の異常、というような精密な「日別診断表」ではない。
重要なのは、器官形成が急速に進む狭い期間に、時期依存性の強い損傷が起きるという事実である。
四肢は「完成した手足が壊れた」のではない
サリドマイドによる四肢形成異常を理解するとき、完成した腕や脚が後から傷ついたように考えると誤解しやすい。
問題が起きるのは、四肢がまだ形成途中の段階である。
人の上肢芽は受精後4週前後、下肢芽はそれよりわずかに遅れて現れ、短期間に細胞増殖、血管形成、位置情報の伝達を繰り返しながら伸長する。
四肢芽の先端にはapical ectodermal ridge(AER)と呼ばれる発生上重要な領域があり、FGF8などのシグナルを通じて、下にある間葉細胞の増殖と四肢の伸長を支える。
またFGF10、SHHなど複数のシグナル系が相互に作用し、上腕、前腕、手、指という順序と位置を作っていく。
この形成途中で発生シグナルが乱れると、「出来上がった骨が破壊される」のではなく、本来作られるはずだった構造そのものが形成されない、短くなる、配置が変わるという結果になる。
サリドマイド胎芽症に見られる四肢減形成は、こうした発生過程の攪乱として理解する必要がある。
何十年も「直接の標的」が分からなかった
1961年に催奇形性との関連が判明してからも、なぜサリドマイドが胚に特有の障害を起こすのかは長く不明だった。
多数の仮説が提案された。
代表的なものには、
- 酸化ストレス
- 血管新生阻害
- DNAへの作用
- 細胞死
- FGFなど発生シグナルへの影響
- 神経系への影響
などがある。
このうち、酸化ストレスや血管新生阻害は多くの実験で支持されてきた。
特に発生中の四肢は、急速な組織成長に合わせて細かな血管網を形成しなければならない。そこで血管形成が阻害されれば、増殖中の組織が酸素や栄養を受けられず、発生障害につながるという説明には生物学的な合理性がある。
ただし、これだけでは説明できない問題が残った。
なぜサリドマイドは特定の動物種には強い催奇形性を示すのに、マウスやラットでは人と同じ異常を再現しにくいのか。
なぜ同じ薬が、成人では抗炎症・抗腫瘍効果を示すのに、発生中の胚では器官形成を壊すのか。
なぜ障害される器官が曝露時期によって変わるのか。
その大きな転換点が2010年だった。
2010年、CRBNという直接標的が見つかった
2010年、東京工業大学などの研究チームは、サリドマイドが直接結合するタンパク質としてcereblon(CRBN、セレブロン)を同定した。
CRBNは単独で働くタンパク質ではない。
DDB1、CUL4などとともに、CRL4^CRBNと呼ばれるE3ユビキチンリガーゼ複合体を形成する。
ユビキチンリガーゼは、細胞内で特定のタンパク質に「分解対象」という印を付けるシステムの一部である。
通常、細胞は不要になったタンパク質や量を調整すべきタンパク質へユビキチンを付加し、プロテアソームで分解する。
CRBNは、この複合体で「どのタンパク質を基質として認識するか」に関わる受容体として働く。
2010年の研究では、サリドマイドがCRBNへ結合すること、そしてCRBNへ結合できない変異体を使うとゼブラフィッシュやニワトリ胚でサリドマイドによる発生障害が軽減することが示された。
これによって、CRBNはサリドマイド作用の中心にある直接標的として位置付けられた。
ただし、ここで話は終わらなかった。
現在は「CRBNを止める」より「基質を変える」と理解されている
2010年当初は、サリドマイドがCRBNを含むユビキチンリガーゼ活性を阻害することが重要だと考えられた。
その後、サリドマイド類似薬の研究が進むと、より複雑な仕組みが見えてきた。
サリドマイドやその誘導体がCRBNへ結合すると、CRBNの表面形状が変わり、本来なら強く認識しないタンパク質を新たな分解対象として捕まえることがある。
このような薬は、二つのタンパク質を近づける「molecular glue(分子糊)」として説明される。
つまり、サリドマイドは単にCRBNのスイッチをOFFにするだけではない。
CRBNを含む分解装置へ「本来とは違う基質」を呼び込み、そのタンパク質をユビキチン化して分解へ送る。
この「新たに分解対象となるタンパク質」はneosubstrate(ネオ基質)と呼ばれる。
催奇形性を理解するうえで重要なネオ基質として、現在とくに注目されているのがSALL4とp63である。
SALL4が有力視される理由
SALL4は、胚発生の初期に働く転写因子である。
転写因子とは、他の多数の遺伝子がいつ、どこで働くかを調節するタンパク質で、発生中の組織形成に大きな影響を持つ。
2018年、研究グループは、サリドマイド存在下でCRBNがSALL4を新たな基質として認識し、ユビキチン化・分解へ導くことを示した。
この発見が特に重要なのは、SALL4遺伝子そのものに病的変異を持つ人で起きる先天異常が、サリドマイド胎芽症と一部よく似ているからである。
SALL4関連疾患では、
- 上肢・橈骨側の形成異常
- 親指の異常
- 耳や眼の異常
- 心臓や腎臓などの異常
が起こりうる。
つまり、
サリドマイド → CRBNの基質選択変化 → SALL4分解 → 発生遺伝子制御の破綻
という経路は、サリドマイド胎芽症の特徴を説明する有力な分子機序になった。
さらに、サリドマイドの主要代謝物の一つである5-hydroxythalidomide(5-ヒドロキシサリドマイド)は、CRBNを介したSALL4分解を強く促すことが示されている。
これにより、「サリドマイドそのもの」だけでなく、体内で生じる代謝物も催奇形性の形成に関与する可能性がより具体的になった。
それでもSALL4だけでは全て説明できない
SALL4は非常に重要だが、現在の研究は「原因はSALL4一つだった」と結論しているわけではない。
2018年の研究では、ヒト型CRBNを持つように改変したマウスであっても、サリドマイドが人と同じような先天異常を十分には引き起こさなかった。
これは重要な結果である。
サリドマイドがCRBNへ結合することは重要だが、それだけでは催奇形性を完成させるのに十分ではないことを示す。
SALL4側のアミノ酸配列にも種差があり、ウサギや人ではサリドマイド依存的にCRBNへ認識されやすい一方、マウスでは同じ分解が起こりにくい。
さらに、発生中の器官では多くの転写因子やシグナル分子が同時に働いている。
一つのネオ基質だけで、四肢、耳、眼、心臓、腎臓、消化管などすべての障害を説明するのは難しい。
p63も別の発生経路をつなぐ
2019年には、p63と呼ばれる転写因子群も、サリドマイド依存的にCRBNへ認識されるネオ基質であることが報告された。[4]
p63には複数のアイソフォームがあり、発生中に担う役割も異なる。
研究では、ΔNp63αが四肢発生、TAp63αが内耳・聴覚系の発生に関わり、サリドマイドによるそれぞれの分解が、ゼブラフィッシュで鰭や耳胞の異常につながることが示された。
この結果は、サリドマイド胎芽症が一種類の障害ではなく、器官ごとに異なる発生タンパク質が影響を受けた複合現象である可能性を補強している。
2025年の大規模レビューでも、SALL4に加えてp63、PLZFなど複数の候補基質、さらに酸化還元異常や血管新生阻害を含めて考える必要があると整理されている。
したがって、現在のもっとも妥当な理解は、
CRBNを中心とするタンパク質分解系の改変が中核にあり、その下流で複数の発生制御因子、細胞シグナル、血管形成などが影響を受ける
という多段階モデルである。
FGF8と四肢の伸長はどう関係するのか
CRBN研究以前から、サリドマイドによってFGF8やFGF10など四肢発生に重要なシグナルが低下することが知られていた。
FGF8は四肢芽先端のAERで発現し、四肢の伸長を維持するうえで重要である。
FGF10は間葉側から働き、AERの形成・維持と相互作用する。
このFGF8-FGF10系が破綻すると、四肢芽は正常に伸び続けられない。
2010年のCRBN研究でも、サリドマイドによってゼブラフィッシュやニワトリ胚のFgf8/Fgf10発現が低下し、サリドマイドへ結合できないCRBN変異体を導入すると、その低下と形成異常が抑えられた。
現在では、FGF低下はCRBN以降の発生経路の一部として捉えられている。
ただし、「CRBN → 一つのタンパク質 → FGF8低下 → 全障害」という一本線に固定するには、まだ証拠が足りない。
複数のネオ基質や代謝物、組織特異的な発現パターンが関与していると考えた方が、実際の多様な障害を説明しやすい。
血管新生阻害説は否定されたのか
否定されたわけではない。
CRBNが見つかる以前から、サリドマイドには強い抗血管新生作用があることが知られていた。
発生中の四肢芽は、急速な細胞増殖と同時に細かな血管網を形成する必要がある。サリドマイドやその代謝物がこの血管形成を阻害すれば、四肢芽の一部が成長できなくなる。
実験研究では、サリドマイド曝露後に血管形成障害が発生異常より先行する例も示されている。
したがって、血管新生阻害は今も有力な構成要素である。
ただし、それがCRBN/SALL4経路と完全に独立した別原因なのか、それとも同じ上流作用から一部つながっているのかは、すべて整理し切れていない。
現在の研究では、昔の仮説を「CRBNが見つかったから全部間違いだった」と捨てるより、CRBNを中心とした分子機序と、血管形成・酸化ストレス・FGFシグナルなどをどう接続するかが重要な課題になっている。
なぜマウスでは人と同じ障害が出にくいのか
サリドマイド史で大きな問題だったのが動物種差である。
マウスやラットは、通常の条件では人と同じ典型的なサリドマイド胎芽症を再現しにくい。一方、ウサギや一部の霊長類では人に近い形成異常が起きる。
この違いは、1950年代の安全性評価が危険を捉えられなかった理由の一つでもある。
現在では少なくとも、
- CRBN自体のアミノ酸配列差
- SALL4などネオ基質側の配列差
- サリドマイド代謝の違い
- 各組織での発生遺伝子発現
- 薬物動態
などが種差に関与すると考えられている。
特にSALL4では、人やウサギのタンパク質はサリドマイド依存的にCRBNへ認識されるが、マウスSALL4は配列差により同じようには分解されない。
これは、「ある動物で異常が出なかった」ことを、そのまま「人でも安全」と解釈できない理由を分子レベルで示す例になった。
「R体は安全、S体だけ危険」なら解決できたのか
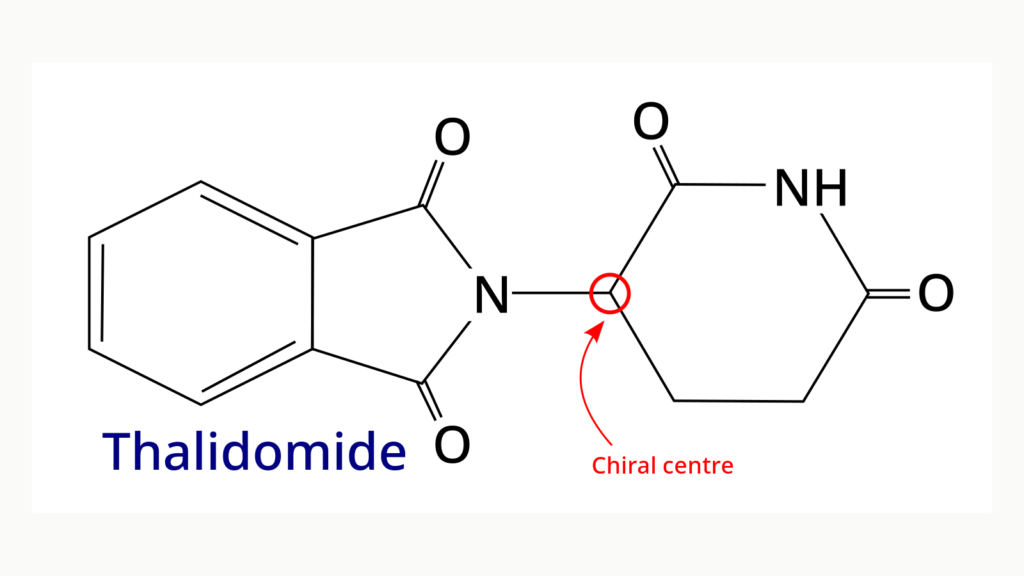
サリドマイドにはR体とS体という二つの鏡像異性体がある。
古くから、
R体=鎮静作用、S体=催奇形性
という説明が広く知られている。
現在の研究では、S体の方がCRBNへ強く結合し、催奇形性作用も強いことは支持されている。構造研究ではS体のCRBN結合力はR体より数倍から約10倍強いと報告されている。
しかし、ここから「R体だけ売れば安全だった」と結論することはできない。
理由は、サリドマイドのR体とS体が生理条件下で相互に変換する、つまりラセミ化するからである。
R体だけを投与しても、体内ではS体が生じうる。
さらに、ウサギなどでは両方の異性体で催奇形性が確認された研究もある。
したがって、「安全なR体と危険なS体を分ければ薬害は防げた」という説明は、現在では単純化し過ぎたものと考えられている。
なぜわずか数日の違いで障害部位が変わるのか
ここまでの分子機序を、感受性時期へ戻して考える。
胚では、すべての遺伝子やタンパク質が常に同じ量で働いているわけではない。
ある時期には耳の形成でSALL4やp63、FGFなど特定の発生制御系が重要になり、少し後には上肢芽、さらに後には下肢芽で同じ、または別のネットワークが重要になる。
サリドマイドがCRBNを介してネオ基質を分解できる状態でも、その時点でそのタンパク質に依存して形成している組織ほど影響を受けやすい。
同時に、血管形成、細胞増殖、酸化還元状態、代謝酵素なども発生段階によって変化する。
この「薬の存在」だけでなく「胚側の発生状態」が変化することが、数日の曝露差で障害部位が変わる大きな理由と考えられる。
ただし、各日・各器官についてCRBN、SALL4、p63、血管形成を一対一で完全に結び付けたモデルはまだ存在しない。
感受性時期の臨床像の方が、分子機序の完全な説明より先に確立しているのである。
現在、どこまでを「分かった」と言えるのか
現在の知見を、確度ごとに分けると理解しやすい。
強く確立していること
- サリドマイドの典型的催奇形性には、受精後およそ20〜36日という強い感受性時期がある。
- 曝露時期により、影響を受けやすい器官のパターンが変わる。
- サリドマイドはCRBNへ直接結合する。
- CRBNはCRL4 E3ユビキチンリガーゼの基質受容体として働く。
- サリドマイド類はCRBNの基質選択を変え、特定のネオ基質を分解へ導く。
- SALL4は催奇形性と強く結び付く重要なネオ基質である。
- p63など他の発生関連タンパク質も関与する。
- 動物種によって感受性が大きく異なる。
有力だが、全体像への統合が続いていること
- 5-ヒドロキシサリドマイドなど代謝物がSALL4分解や催奇形性へどの程度寄与するか。
- 血管新生阻害がCRBN経路のどこで接続するか。
- 酸化ストレスが上流原因なのか、下流結果なのか、並列経路なのか。
- 各器官の感受性時期を、個々のネオ基質の発現とどこまで対応付けられるか。
- 四肢以外の心臓、腎臓、消化管、神経系などの障害を同じ分子モデルでどこまで説明できるか。
つまり、「直接標的は分かったが、サリドマイド胎芽症全体の回路図はまだ完成していない」というのが現在地に近い。
よくある疑問を整理する
1.妊娠中なら、いつ服用しても同じ障害が出るのか。
違う。典型的な構造異常には受精後約20〜36日の強い感受性時期があり、その中でも曝露日によって影響を受けやすい器官が異なる。
2.20〜36日を過ぎればサリドマイドは安全なのか。
そういう意味ではない。この期間は典型的な構造奇形との関連が最も明確な時期である。妊娠喪失や神経発達など、構造異常のタイムテーブルだけでは捉えきれない影響もありうる。現在のサリドマイド製剤は妊娠中の使用を避ける厳格な管理対象である。
3.原因はCRBNなのか、SALL4なのか。
階層が違う。サリドマイドが直接結合する中心的標的がCRBNで、その結合によってSALL4など本来とは異なるタンパク質が分解対象として認識される。SALL4は下流の重要なネオ基質の一つである。
4.SALL4だけで全部説明できるのか。
できない。p63など複数の候補基質、FGFシグナル、血管新生、酸化ストレスなども関与すると考えられている。
5.血管新生阻害説は古くて間違いなのか。
否定されていない。現在はCRBN中心の分子機序と、血管形成障害など従来の知見をどう統合するかが研究課題になっている。
6.マウスで異常が出にくいなら、人にも安全と判断できなかったのか。
できない。サリドマイドは強い種差を持ち、CRBNやSALL4の配列、代謝などが違う。現在では、その分子基盤の一部まで分かっている。
7.R体だけなら安全だったのか。
そうは言えない。S体の方がCRBNへの結合と催奇形性が強いが、R体とS体は体内で相互変換するため、R体だけを投与して催奇形性を回避するという考えは成立しにくい。
感受性時期と分子機序を一枚でつなぐ
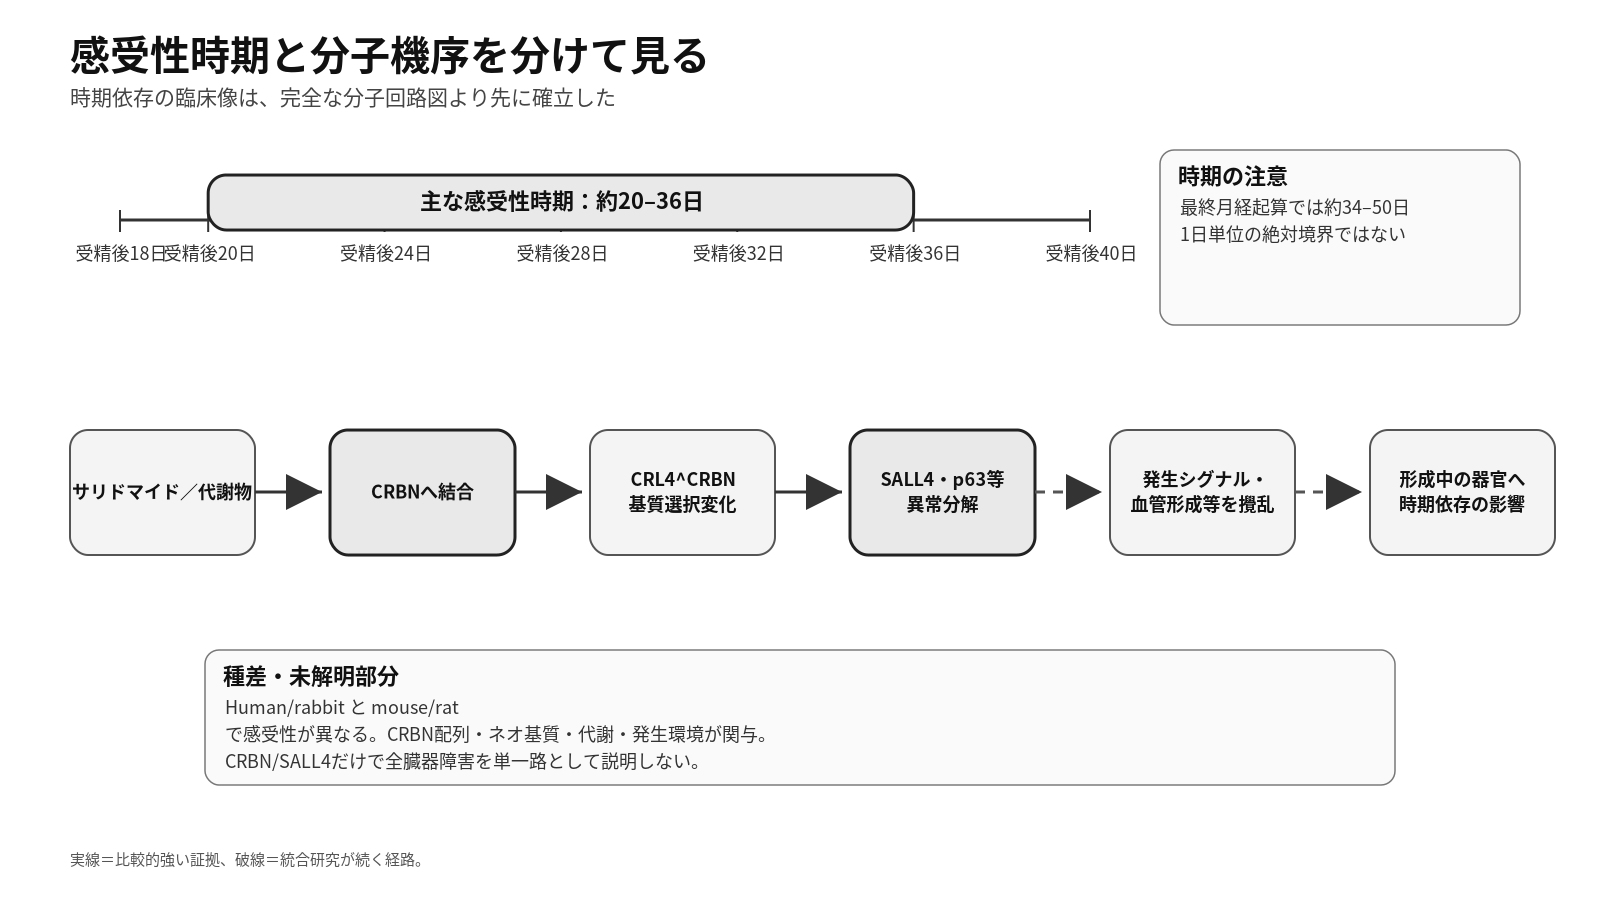
サリドマイド胎芽症を最も簡潔にまとめると、次の流れになる。
妊娠初期の器官形成期
↓
サリドマイド/代謝物が胚へ到達
↓
CRBNへ結合
↓
CRL4^CRBNの基質選択が変化
↓
SALL4・p63など発生関連タンパク質の異常分解
↓
FGFなど発生シグナル、細胞増殖、血管形成などが攪乱
↓
その瞬間に形成中だった器官が影響を受ける
↓
四肢、耳、眼、内臓など時期依存の形成異常
ただし、この図の中央から下流には、まだ複数の並列経路と未解明部分がある。
サリドマイド薬害が示したのは、「毒性のある一分子が組織を直接壊す」という単純な構図ではない。
発生の限られた時間帯に、タンパク質分解、遺伝子制御、血管形成、細胞シグナルという複数のシステムへ介入すると、完成前の器官そのものの設計が変わってしまうという現象だった。
1961年に臨床現場から見えていたのは、その結果である。
その結果から約半世紀を経て、ようやくCRBN、SALL4、p63という分子レベルの回路が見え始めた。
そして次の記事では、同じ薬を前にして米国だけがなぜ一般販売承認へ進まなかったのかを追う。
フランシス・ケルシー個人の判断だけでなく、FDA審査、申請資料、治験薬管理、そして1962年の薬事改革までを制度として検証する。
FACT CHECK|出典・参考資料
- [1] Ito T, Ando H, Suzuki T, et al. “Identification of a primary target of thalidomide teratogenicity.” Science . 2010;327:1345–1350
- [2] Donovan KA, An J, Nowak RP, et al. “Thalidomide promotes degradation of SALL4, a transcription factor implicated in Duane Radial Ray syndrome.” eLife . 2018
- [3] Matyskiela ME, Couto S, Zheng X, et al. “SALL4 mediates teratogenicity as a thalidomide-dependent cereblon substrate.” Nature Chemical Biology . 2018;14:981–987
- [4] Asatsuma-Okumura T, Ando H, De Simone M, et al. “p63 is a cereblon substrate involved in thalidomide teratogenicity.” Nature Chemical Biology . 2019;15:1077–1084
- [5] Furihata H, Yamanaka S, Honda T, et al. “Structural bases of IMiD selectivity that emerges by 5-hydroxythalidomide.” Nature Communications . 2020;11:4578
- [6] Asatsuma-Okumura T, Ito T, Handa H. “Molecular Mechanisms of the Teratogenic Effects of Thalidomide.” Pharmaceuticals . 2020
- [7] Vargesson N. “Thalidomide-induced teratogenesis: History and mechanisms.” Birth Defects Research Part C . 2015
- [8] Miller MT, Strömland K. “What can we learn from the thalidomide experience: an ophthalmologic perspective.” Current Opinion in Ophthalmology . 2011
- [9] Collins MD, Scott WJ. “Thalidomide-induced limb malformations: an update and reevaluation.” Archives of Toxicology . 2025;99:1643–1747
- [10] Mori T, Ito T, Liu S, et al. “Structural basis of thalidomide enantiomer binding to cereblon.” Scientific Reports . 2018
サリドマイド薬害|「安全な薬」はなぜ世界的被害を生んだのか 第4回 全8回 全8回を見る
- 01 サリドマイド薬害とは何だったのか――「安全な薬」が世界的被害を生むまで
- 02 サリドマイド薬害|なぜサリドマイドは「安全」と信じられたのか――1950年代の開発・販売と規制の空白
- 03 サリドマイド薬害|先天異常との関係はどう突き止められたのか――1961年、レンツとマクブライドの警告
- 04 サリドマイド薬害|なぜ胎児に重い障害を起こしたのか――感受性時期と現在の作用機序理解
- 05 サリドマイド薬害|なぜ米国では正式承認されなかったのか――フランシス・ケルシーと1962年薬事改革
- 06 サリドマイド薬害|日本ではなぜ被害が拡大したのか――レンツ警告から販売停止・回収、1974年和解まで
- 07 サリドマイド薬害|なぜサリドマイドは再び医薬品になったのか――治療効果と2008年日本再承認
- 08 サリドマイド薬害|現在はどう再発を防いでいるのか――TERMSと2026年の安全管理改訂